

Understanding the nuanced mechanisms of fatigue is essential for coaches, physiotherapists, and athletes aiming to optimize performance and mitigate injury risks. Fatigue is frequently perceived as a singular sensation of exhaustion, yet it is a complex, multi-factorial process characterised by a temporary decrease in physical performance. In sports science, fatigue is not viewed as a global failure but rather as a highly task-dependent phenomenon. Enoka et al. in their seminal 2008 paper [1], noted that fatigue can be caused by many different mechanisms, ranging from the accumulation of metabolites within muscle fibres to the generation of an inadequate motor command in the motor cortex. To effectively manage training loads, it is crucial to divide this complex phenomenon into two primary domains, peripheral fatigue and central fatigue, while understanding the structural, chemical, and neuromuscular changes occurring at the cellular level.
Peripheral Fatigue: The Sarcomere and Cellular Level
Peripheral fatigue refers to the processes occurring at or distal to the neuromuscular junction. It is the loss of force-producing capacity originating directly within the muscle tissue itself. When an athlete engages in intense or prolonged exercise, several profound physiological changes occur within the muscle architecture that inhibit contraction. One of the most critical sites of peripheral fatigue is the sarcomere, the fundamental contractile unit of the muscle.
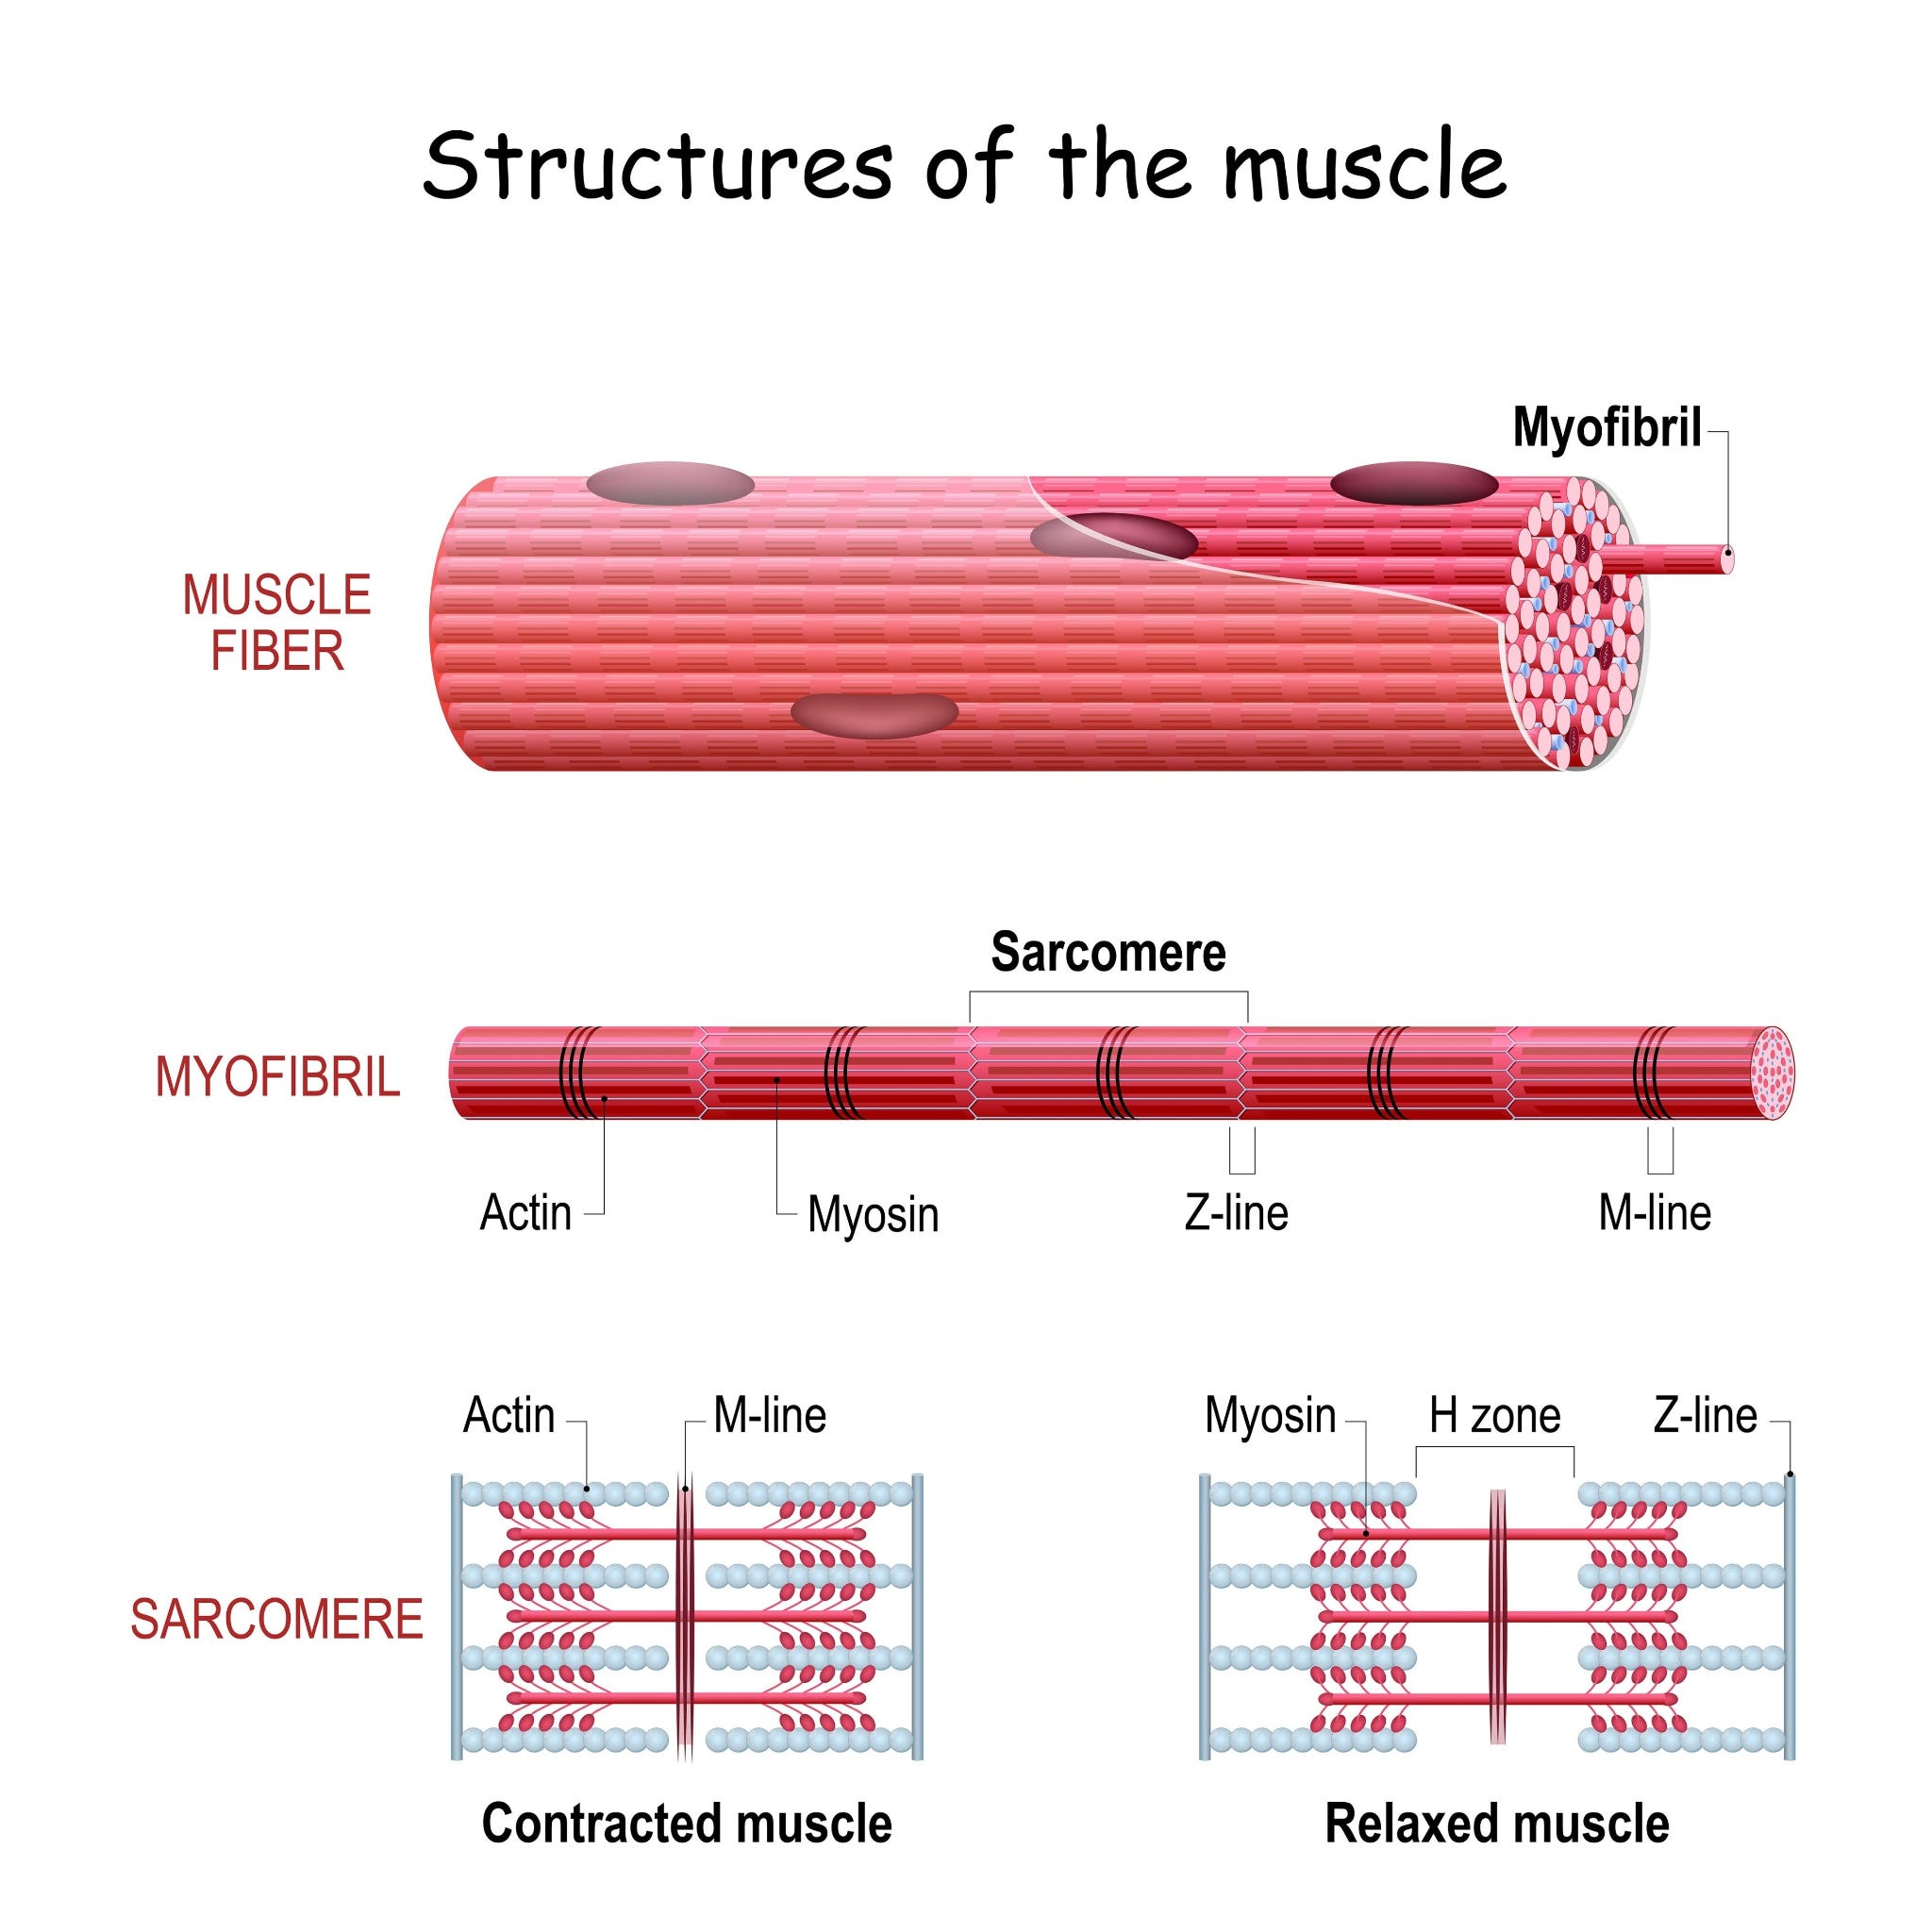
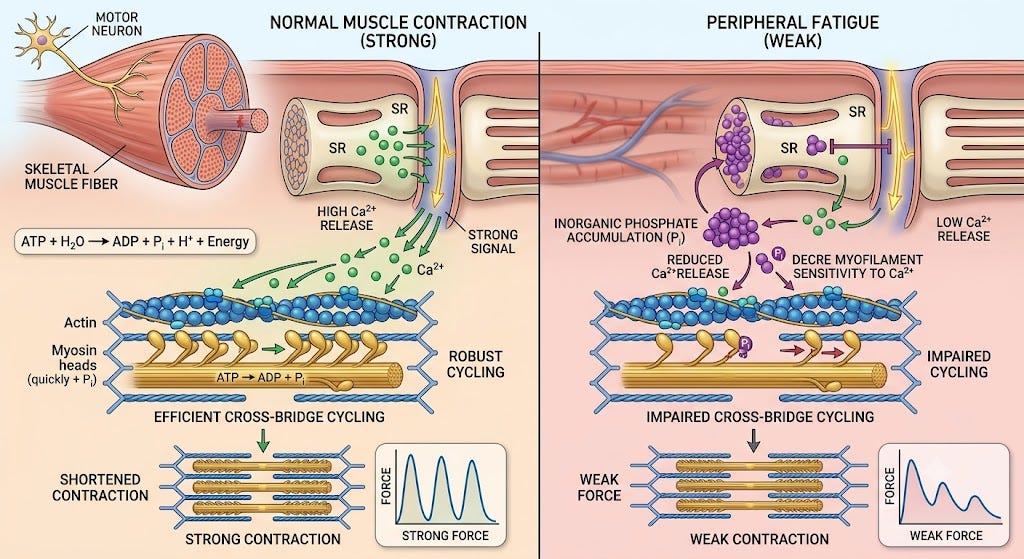
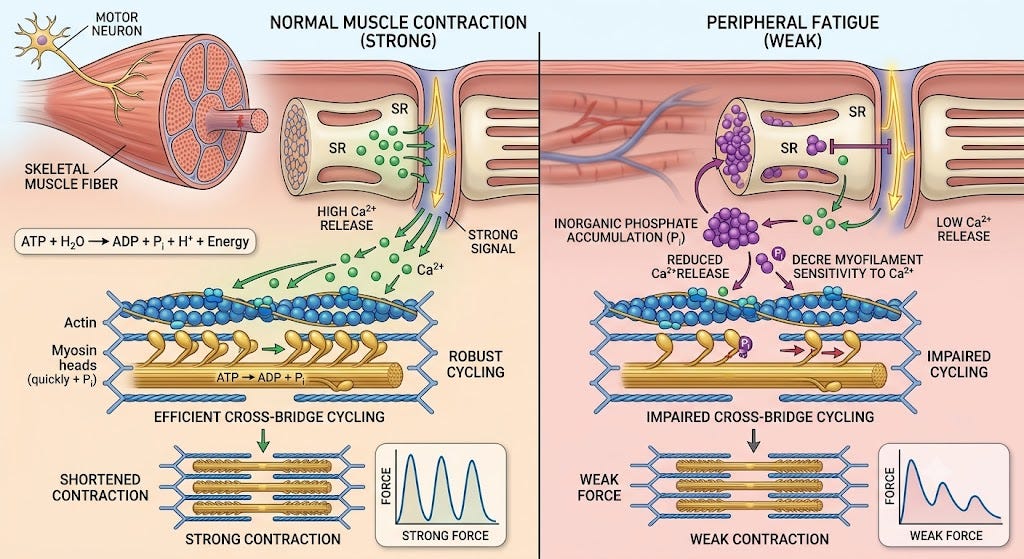
Muscle contraction relies on the release and reuptake of calcium ions from the sarcoplasmic reticulum. The mechanical work of the muscle is driven by the hydrolysis of adenosine triphosphate, commonly known as ATP. The basic chemical equation for this energy release is ATP plus H2O yields ADP plus Pi plus a hydrogen ion plus energy. During repeated high-intensity contractions, the ionic exchange in the sarcomere becomes compromised. The accumulation of the products from this equation, specifically inorganic phosphate and hydrogen ions, directly interferes with the release of calcium and decreases the sensitivity of the myofilaments.
The cross-bridge cycle, which can be represented by the interaction of Myosin-ADP-Pi and Actin forming an Actomyosin complex that subsequently releases ADP and Pi to create the power stroke, is impaired. Even if the brain sends a strong signal to the muscle, the mechanical cycling between actin and myosin filaments is hindered, leading to a weaker contraction.
Metabolic Accumulation and Substrate Depletion
Metabolic accumulation and substrate depletion also play significant roles in peripheral fatigue. During high-intensity exercise, the reliance on anaerobic glycolysis leads to the accumulation of hydrogen ions, lowering the intracellular pH. B. Grassi et al. [2] highlighted that fatigue and muscle inefficiency share common mechanisms, including decreased metabolic stability and altered motor unit recruitment patterns. Furthermore, the depletion of intramuscular glycogen stores leaves the muscle without its primary fuel source for sustained work. When glycogen is depleted, the muscle cannot maintain the necessary rate of ATP regeneration, leading to a drop in power output.
Exercise-Induced Damage and Systemic Biomarkers
Exercise-induced muscle damage represents another distinct physiological origin of peripheral fatigue. Unaccustomed exercise, particularly movements involving heavy eccentric loads where the muscle lengthens under tension, causes microscopic structural damage to the muscle fibres and the surrounding extracellular matrix. This muscle damage disrupts the integrity of the sarcolemma and the sarcoplasmic reticulum, further impairing calcium kinetics and force transmission. The inflammatory response that follows muscle damage leads to a prolonged depression in force-producing capacity that can last for several days.
To accurately monitor these peripheral changes, sports scientists rely on specific biomarkers of fatigue. When structural damage occurs within the muscle fibers, intracellular proteins leak into the systemic circulation. Creatine phosphokinase and myoglobin are two primary biomarkers used to assess the extent of muscle membrane disruption. Elevated levels of creatine phosphokinase in the blood provide a quantifiable measure of the mechanical stress endured by the muscular system. Beyond markers of acute damage, the endocrine system offers a window into the athlete’s systemic recovery state. The ratio of testosterone to cortisol is frequently monitored as an indicator of the anabolic and catabolic balance within the body. A significant decrease in this ratio often signals that the athlete is experiencing excessive physical stress and insufficient recovery, shifting towards a catabolic state that impedes tissue repair.
The Endocrine and Metabolic Responses on Overtraining Syndrome study, conducted by Cadegiani et al. [3], further expanded the understanding of fatigue biomarkers. The research demonstrated that a combination of metabolic, hormonal, and clinical markers provides a more accurate diagnostic tool than any single variable. Monitoring changes in resting heart rate variability, alongside blood urea nitrogen levels - which indicate increased protein breakdown during glycogen depletion - allows practitioners to build a comprehensive profile of an athlete’s physiological resilience.
Central Fatigue: The Nervous System and Motor Drive
In contrast to the localised nature of peripheral fatigue, central fatigue originates within the central nervous system, encompassing the brain and the spinal cord. It is defined as a progressive exercise-induced failure of the nervous system to adequately drive the working muscles. Taylor et al. [4] explained that in addition to impaired function of the motor system, sensations associated with fatigue and impairment of homeostasis can contribute to the impairment of performance. Central fatigue means that the muscles themselves may still possess the biochemical capacity to generate force, but the motor cortex is failing to recruit the motor units effectively or is firing them at a suboptimal frequency.
The nervous system is highly sensitive to the physiological stress of exercise. As muscle work continues, sensory neurons known as group III and group IV afferent fibres detect the accumulation of metabolites, the increase in temperature, and the mechanical stress within the muscle. These afferents send inhibitory signals back to the spinal cord and the motor cortex. This feedback loop serves as a protective mechanism, reducing motor drive to prevent the athlete from causing irreversible structural damage or complete metabolic failure in the peripheral tissues.
The Role of Neurochemistry in Exhaustion
Neurochemical changes within the brain also strongly influence central fatigue. Prolonged physical exertion alters the synthesis and metabolism of several key neurotransmitters, most notably serotonin, dopamine, and noradrenaline. Meeusen et al. [5] work on the central fatigue has shown that an increase in the ratio of serotonin to dopamine in the brain is consistently linked to feelings of lethargy, an increased perception of effort, and a decrease in the motivation to sustain high-intensity work. Therefore, the athlete’s subjective sensation of exhaustion is tightly coupled with these complex neurochemical shifts, demonstrating that fatigue is as much a neurological event as it is a muscular one.
Clinical Assessment of Neuromuscular Fatigue
To differentiate between central and peripheral fatigue, sports scientists employ specific assessment techniques, the most prominent in laboratory settings being peripheral nerve electrical stimulation. The gold standard method for quantifying these fatigue components is the twitch interpolation technique [6]. This assessment requires the athlete to perform a maximal voluntary isometric contraction. While the athlete is contracting as hard as they possibly can, a brief, high-intensity electrical stimulus is delivered to the peripheral nerve innervating the active muscle. If the central nervous system is maximally driving the muscle, all available motor units will be recruited, and the electrical stimulus will not produce any additional force. However, if the athlete is experiencing central fatigue, the electrical stimulus will recruit the motor units that the brain failed to activate, resulting in a sudden, transient spike in force known as a superimposed twitch. The amplitude of this superimposed twitch provides a direct measure of central activation failure.
Following the maximal voluntary contraction, another electrical stimulus is delivered while the muscle is completely relaxed, evoking a resting twitch. The amplitude and the mechanical properties of this resting twitch, such as the rate of force development and the relaxation time, isolate the peripheral properties of the muscle. If the resting twitch force is significantly lower than it was prior to exercise, it demonstrates that peripheral fatigue is present, as the reduction in force cannot be attributed to a lack of central nervous system drive.
Continuous Monitoring in the Field
While electrical stimulation remains an indispensable tool for research, it presents practical limitations for everyday field use, as it requires cumbersome equipment and isometric testing setups. Consequently, the field of sports science often relies on surface electromyography to assess fatigue non-invasively during actual movement. Wearable sensors placed over the muscle belly can record the electrical activity produced by skeletal muscles as they contract.
As a muscle fatigues, the conduction velocity of the action potentials along the muscle fiber membrane slows down. In a continuous electromyography recording, this is observed as a shift in the median frequency of the signal toward lower frequencies, accompanied by an increase in the signal’s overall amplitude as the central nervous system attempts to recruit more motor units to maintain the same force output.
Beyond electrical activity, monitoring the mechanical response of the muscle provides another crucial perspective on peripheral fatigue. During dynamic activities, the impact forces cause the muscle bellies and surrounding soft tissues to vibrate. As the muscle fatigues, its damping characteristics and activation patterns inevitably change. Khassetarash et al. [7] , in their research on fatigue and soft tissue vibration during prolonged running, demonstrated that the frequency and amplitude of these vibrations are significantly altered as exhaustion develops. Utilising small wearable sensors to capture these unique soft tissue vibration patterns could offer a direct, non-invasive window into the muscle’s structural stress and its declining capacity to absorb shock over time. Translating these electrophysiological and biomechanical data points into actionable insights allows for continuous, dynamic fatigue monitoring without interrupting the training session.
Targeted Recovery and Load Management
Understanding the distinction between peripheral metabolic limitations, structural muscle damage, and central nervous system drive allows coaches and physiotherapists to apply targeted recovery strategies. If an assessment reveals severe peripheral fatigue driven by glycogen depletion, the immediate intervention must be nutritional. If the fatigue is characterised by significant muscle damage and impaired excitation-contraction coupling, indicated by elevated creatine phosphokinase, the athlete requires mechanical rest and sleep to assist in tissue repair. Conversely, if assessments indicate profound central fatigue, interventions might focus on mental recovery, reducing cognitive load, or implementing strategic tapering to restore neurotransmitter balance and central nervous system drive. By understanding the multi-faceted origins of fatigue, practitioners can ensure that training loads are optimised and the athlete is prepared to perform at their highest potential.
Bibliography
R. M. Enoka and J. Duchateau, “Muscle fatigue: what, why and how it influences muscle function,” The Journal of Physiology, vol. 586, pp. 11-23, 2008. DOI: 10.1113/jphysiol.2007.139477
B. Grassi, H. B. Rossiter, and J. A. Zoladz, “Skeletal Muscle Fatigue and Decreased Efficiency: Two Sides of the Same Coin?,” Exercise and Sport Sciences Reviews, vol. 43, pp. 75-83, 2015. DOI: 10.1249/jes.0000000000000043
F. A. Cadegiani and C. E. Kater, “Hormonal aspects of overtraining syndrome: a systematic review,” BMC Sports Science, Medicine and Rehabilitation, vol. 9, 2017. DOI: 10.1186/s13102-017-0079-8
J. L. Taylor, M. Amann, J. Duchateau, R. Meeusen, and C. L. Rice, “Neural Contributions to Muscle Fatigue: From the Brain to the Muscle and Back Again,” Medicine & Science in Sports & Exercise, vol. 48, pp. 2294-2306, 2016. DOI: 10.1249/mss.0000000000000923
R. Meeusen, P. Watson, H. Hasegawa, B. Roelands, and M. F. Piacentini, “Central Fatigue: The Serotonin Hypothesis and Beyond,” Sports Medicine, vol. 36, pp. 881-909, 2006. DOI: 10.2165/00007256-200636100-00006
D. Neyroud, A. J. Cheng, N. Bourdillon, B. Kayser, N. Place, and H. Westerblad, “Muscle Fatigue Affects the Interpolated Twitch Technique When Assessed Using Electrically-Induced Contractions in Human and Rat Muscles,” Frontiers in Physiology, vol. 7, 2016. DOI: 10.3389/fphys.2016.00252
A. Khassetarash, R. Hassannejad, M. M. Ettefagh, and V. Sari-Sarraf, “Fatigue and soft tissue vibration during prolonged running,” Human Movement Science, vol. 44, pp. 157-167, 2015. DOI: 10.1016/j.humov.2015.08.024
L’épuisement a plusieurs facettes: comprendre la complexité de la fatigue
Une analyse de la fatigue périphérique et centrale, des biomarqueurs qui les suivent, et comment programmer une récupération plus intelligente.
Comprendre les mécanismes nuancés de la fatigue est essentiel pour les entraîneurs, les kinésithérapeutes et les athlètes qui cherchent à optimiser la performance et à réduire les risques de blessure. La fatigue est fréquemment perçue comme une sensation unique d’épuisement, alors qu’il s’agit d’un processus complexe et multifactoriel caractérisé par une diminution temporaire de la performance physique. En sciences du sport, la fatigue n’est pas considérée comme une défaillance globale, mais plutôt comme un phénomène hautement dépendant de la tâche. Enoka et al., dans leur article fondateur de 2008 [1], ont noté que la fatigue peut être causée par de nombreux mécanismes différents, allant de l’accumulation de métabolites dans les fibres musculaires à la génération d’une commande motrice inadéquate dans le cortex moteur. Pour gérer efficacement les charges d’entraînement, il est crucial de diviser ce phénomène complexe en deux domaines principaux, la fatigue périphérique et la fatigue centrale, tout en comprenant les changements structurels, chimiques et neuromusculaires qui se produisent au niveau cellulaire.
La fatigue périphérique : le sarcomère et le niveau cellulaire
La fatigue périphérique désigne les processus qui se produisent au niveau de la jonction neuromusculaire ou en aval de celle-ci. C’est la perte de capacité à produire de la force qui provient directement du tissu musculaire lui-même. Lorsqu’un athlète s’engage dans un exercice intense ou prolongé, plusieurs changements physiologiques profonds se produisent au sein de l’architecture musculaire et inhibent la contraction. L’un des sites les plus critiques de la fatigue périphérique est le sarcomère, l’unité contractile fondamentale du muscle.
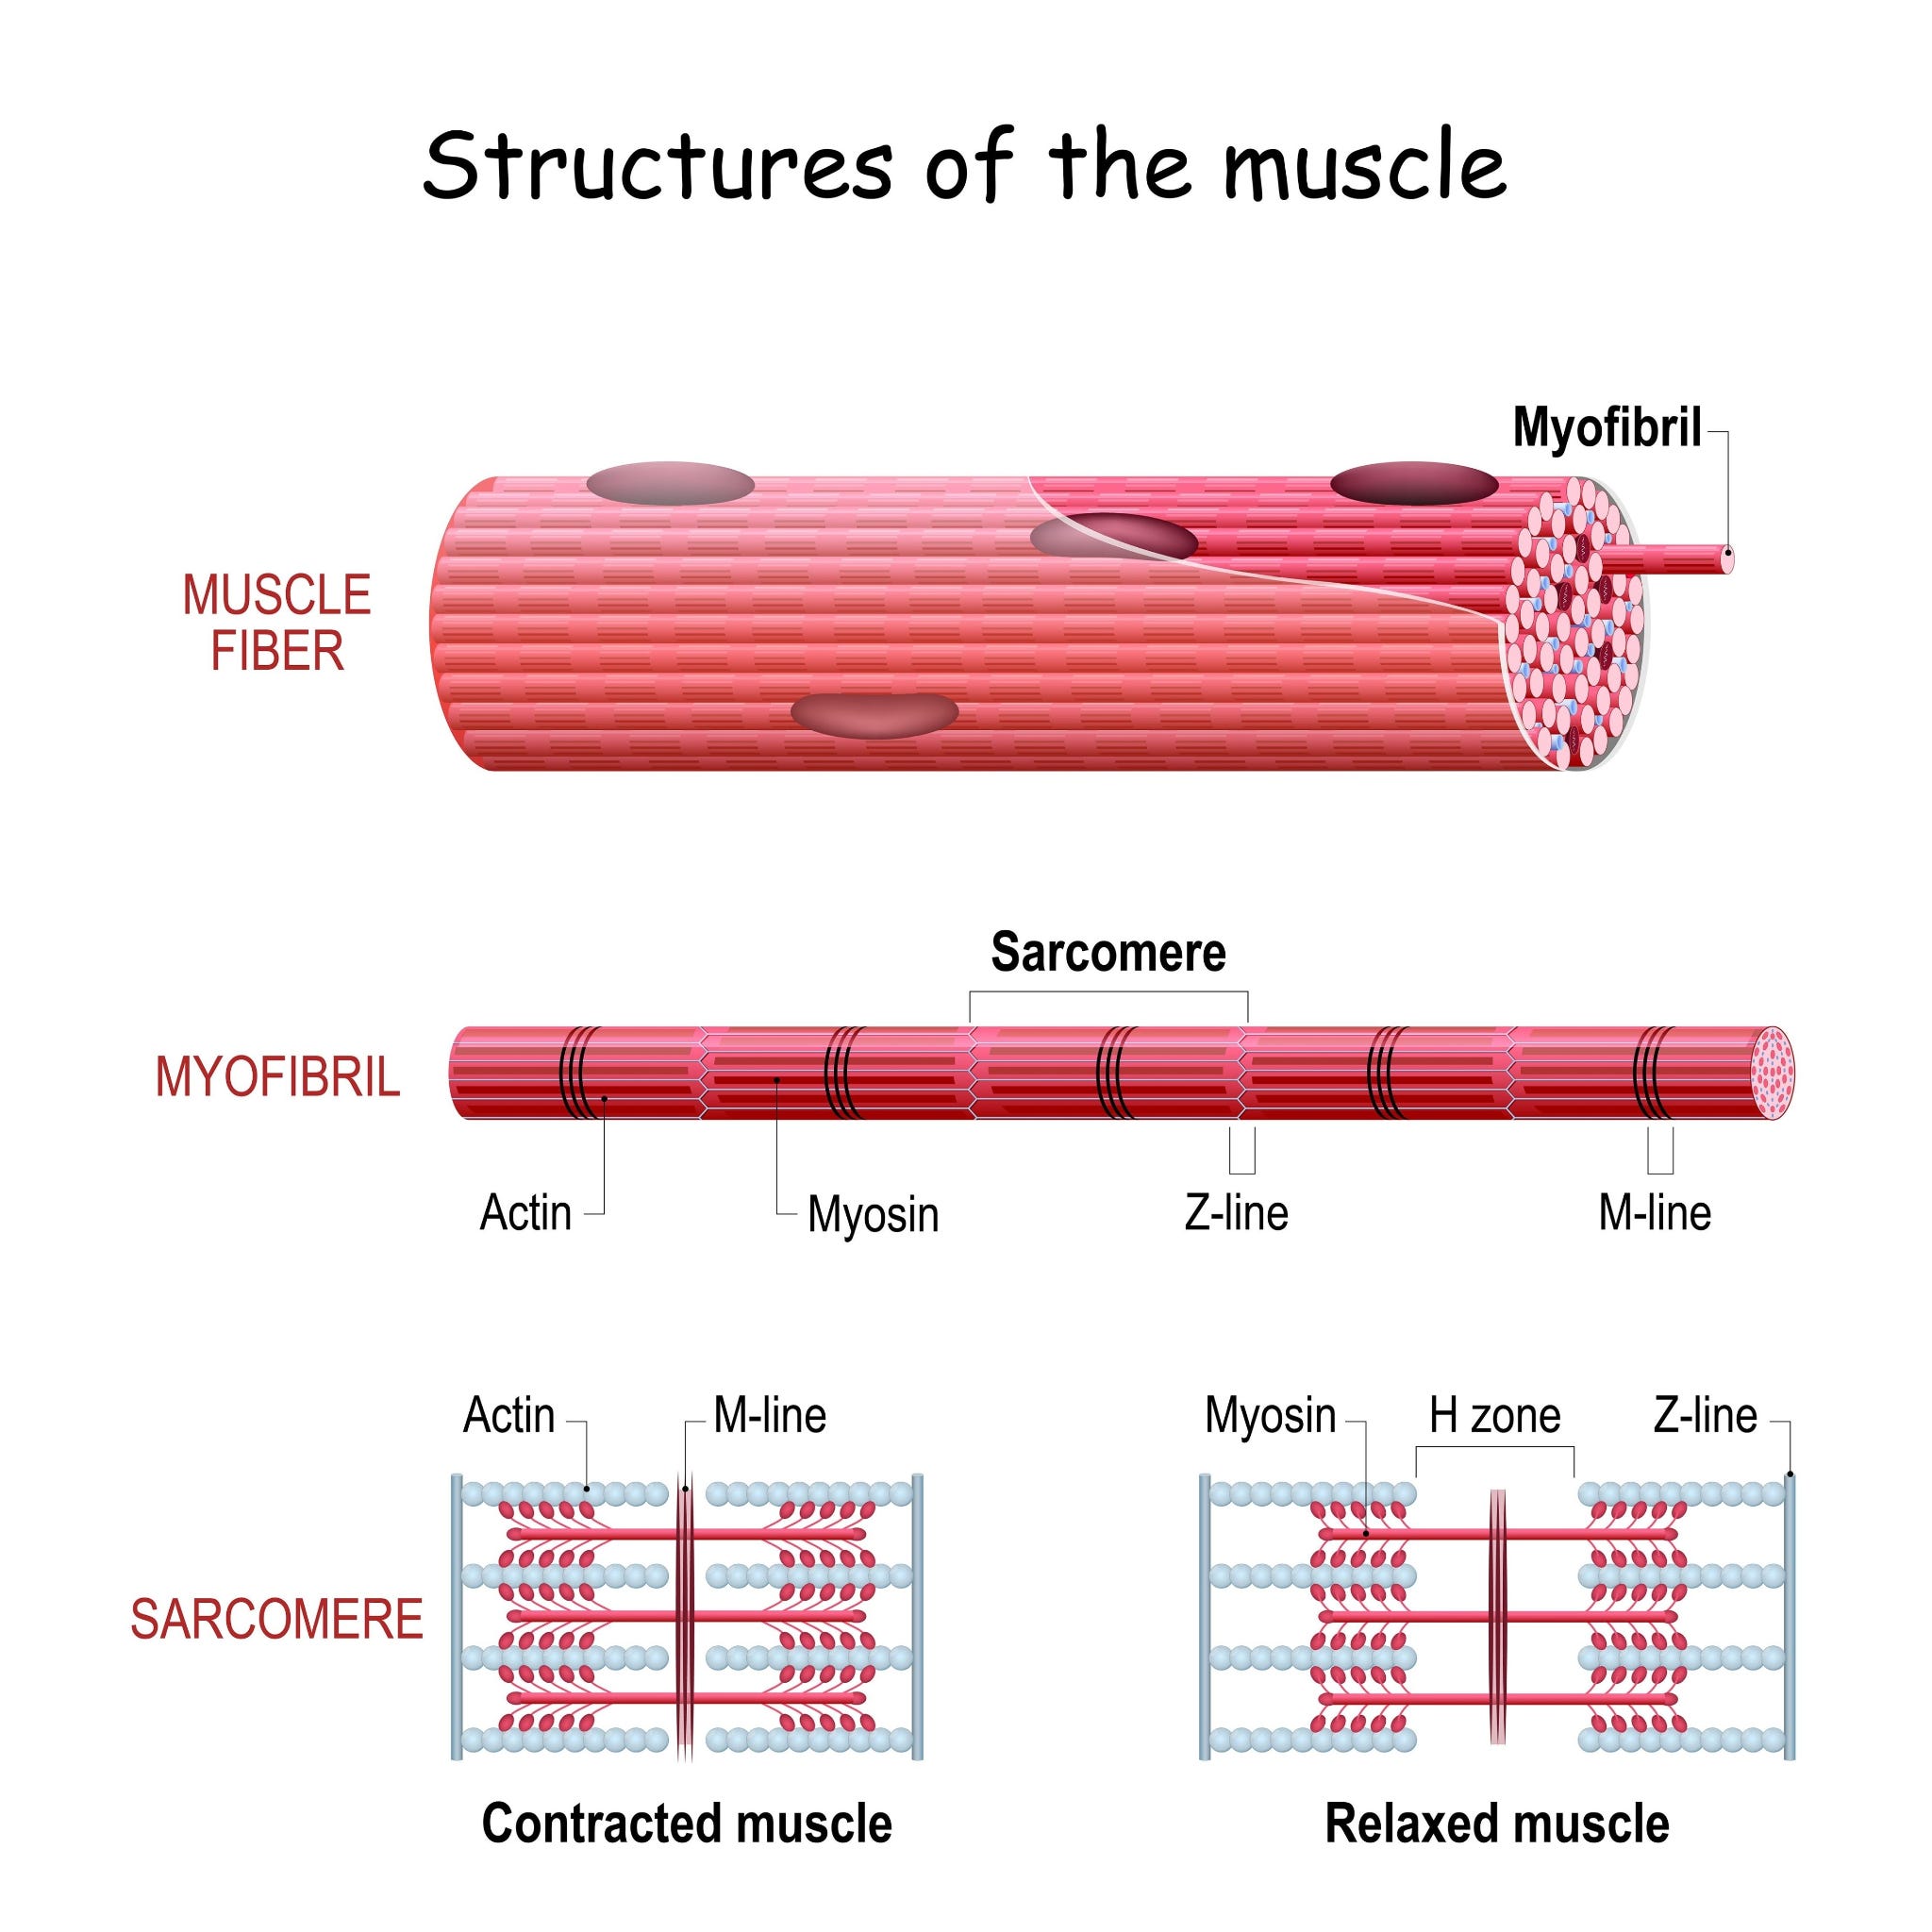
La contraction musculaire repose sur la libération et la recapture des ions calcium par le réticulum sarcoplasmique. Le travail mécanique du muscle est alimenté par l’hydrolyse de l’adénosine triphosphate, communément appelée ATP. L’équation chimique de base de cette libération d’énergie est : ATP plus H2O produit ADP plus Pi plus un ion hydrogène plus de l’énergie. Lors de contractions répétées à haute intensité, l’échange ionique dans le sarcomère est compromis. L’accumulation des produits de cette équation, en particulier le phosphate inorganique et les ions hydrogène, interfère directement avec la libération de calcium et diminue la sensibilité des myofilaments. Le cycle des ponts d’union (cross-bridge cycle), qui peut être représenté par l’interaction de Myosine-ADP-Pi et Actine formant un complexe Actomyosine qui libère ensuite ADP et Pi pour créer le coup de force (power stroke), est altéré. Même si le cerveau envoie un signal fort au muscle, le cycle mécanique entre les filaments d’actine et de myosine est entravé, entraînant une contraction plus faible.
Accumulation métabolique et déplétion des substrats
L’accumulation métabolique et la déplétion des substrats jouent également des rôles significatifs dans la fatigue périphérique. Lors d’un exercice à haute intensité, la dépendance à la glycolyse anaérobie conduit à l’accumulation d’ions hydrogène, abaissant le pH intracellulaire. B. Grassi et al. [2] ont souligné que la fatigue et l’inefficacité musculaire partagent des mécanismes communs, notamment une stabilité métabolique diminuée et des schémas de recrutement des unités motrices altérés. De plus, la déplétion des réserves de glycogène intramusculaire prive le muscle de sa source de carburant principale pour un travail soutenu. Lorsque le glycogène est épuisé, le muscle ne peut pas maintenir le taux nécessaire de régénération de l’ATP, entraînant une chute de la puissance produite.
Dommages induits par l’exercice et biomarqueurs systémiques
Les dommages musculaires induits par l’exercice représentent une autre origine physiologique distincte de la fatigue périphérique. L’exercice inhabituel, en particulier les mouvements impliquant de lourdes charges excentriques où le muscle s’allonge sous tension, provoque des dommages structurels microscopiques aux fibres musculaires et à la matrice extracellulaire environnante. Ces dommages musculaires perturbent l’intégrité du sarcolemme et du réticulum sarcoplasmique, altérant davantage la cinétique du calcium et la transmission de la force. La réponse inflammatoire qui suit les dommages musculaires entraîne une dépression prolongée de la capacité à produire de la force, pouvant durer plusieurs jours.
Pour surveiller avec précision ces changements périphériques, les scientifiques du sport s’appuient sur des biomarqueurs spécifiques de la fatigue. Lorsque des dommages structurels surviennent au sein des fibres musculaires, des protéines intracellulaires fuient dans la circulation systémique. La créatine phosphokinase et la myoglobine sont deux biomarqueurs principaux utilisés pour évaluer l’étendue de la perturbation de la membrane musculaire. Des niveaux élevés de créatine phosphokinase dans le sang fournissent une mesure quantifiable du stress mécanique subi par le système musculaire. Au-delà des marqueurs de dommages aigus, le système endocrinien offre une fenêtre sur l’état de récupération systémique de l’athlète. Le ratio testostérone/cortisol est fréquemment surveillé comme indicateur de l’équilibre anabolique et catabolique dans l’organisme. Une diminution significative de ce ratio signale souvent que l’athlète subit un stress physique excessif et une récupération insuffisante, basculant vers un état catabolique qui entrave la réparation tissulaire.
L’étude sur les réponses endocriniennes et métaboliques au syndrome de surentraînement (Endocrine and Metabolic Responses on Overtraining Syndrome), menée par Cadegiani et al. [3], a élargi davantage la compréhension des biomarqueurs de la fatigue. La recherche a démontré qu’une combinaison de marqueurs métaboliques, hormonaux et cliniques fournit un outil diagnostique plus précis que n’importe quelle variable isolée. Le suivi des modifications de la variabilité de la fréquence cardiaque au repos, conjointement avec les niveaux d’azote uréique sanguin — qui indiquent une dégradation protéique accrue lors de la déplétion en glycogène — permet aux praticiens de construire un profil complet de la résilience physiologique d’un athlète.
La fatigue centrale : le système nerveux et la commande motrice
Contrairement à la nature localisée de la fatigue périphérique, la fatigue centrale prend son origine dans le système nerveux central, englobant le cerveau et la moelle épinière. Elle est définie comme une défaillance progressive, induite par l’exercice, de la capacité du système nerveux à stimuler adéquatement les muscles en activité. Taylor et al. [4] ont expliqué qu’en plus de l’altération de la fonction du système moteur, les sensations associées à la fatigue et l’altération de l’homéostasie peuvent contribuer à la détérioration de la performance. La fatigue centrale signifie que les muscles eux-mêmes possèdent peut-être encore la capacité biochimique de générer de la force, mais que le cortex moteur échoue à recruter efficacement les unités motrices ou les active à une fréquence sous-optimale.
Le système nerveux est très sensible au stress physiologique de l’exercice. À mesure que le travail musculaire se poursuit, des neurones sensoriels connus sous le nom de fibres afférentes des groupes III et IV détectent l’accumulation de métabolites, l’augmentation de la température et le stress mécanique au sein du muscle. Ces afférences envoient des signaux inhibiteurs à la moelle épinière et au cortex moteur. Cette boucle de rétroaction sert de mécanisme de protection, réduisant la commande motrice pour empêcher l’athlète de causer des dommages structurels irréversibles ou une défaillance métabolique complète dans les tissus périphériques.
Le rôle de la neurochimie dans l’épuisement
Les changements neurochimiques dans le cerveau influencent également fortement la fatigue centrale. Un effort physique prolongé modifie la synthèse et le métabolisme de plusieurs neurotransmetteurs clés, notamment la sérotonine, la dopamine et la noradrénaline. Les travaux de Meeusen et al. [5] sur la fatigue centrale ont montré qu’une augmentation du ratio sérotonine/dopamine dans le cerveau est systématiquement liée à des sensations de léthargie, une perception accrue de l’effort et une diminution de la motivation à maintenir un travail à haute intensité. Ainsi, la sensation subjective d’épuisement de l’athlète est étroitement couplée à ces changements neurochimiques complexes, démontrant que la fatigue est autant un événement neurologique qu’un événement musculaire.
Évaluation clinique de la fatigue neuromusculaire
Pour différencier la fatigue centrale de la fatigue périphérique, les scientifiques du sport utilisent des techniques d’évaluation spécifiques, la plus répandue en milieu de laboratoire étant la stimulation électrique des nerfs périphériques. La méthode de référence pour quantifier ces composantes de la fatigue est la technique de la secousse surimposée (twitch interpolation technique) [6]. Cette évaluation exige que l’athlète réalise une contraction isométrique maximale volontaire. Pendant que l’athlète contracte aussi fort que possible, un stimulus électrique bref et de haute intensité est délivré au nerf périphérique innervant le muscle actif. Si le système nerveux central stimule le muscle de manière maximale, toutes les unités motrices disponibles seront recrutées, et le stimulus électrique ne produira aucune force supplémentaire. En revanche, si l’athlète présente une fatigue centrale, le stimulus électrique recrutera les unités motrices que le cerveau n’a pas réussi à activer, produisant un pic soudain et transitoire de force appelé secousse surimposée (superimposed twitch). L’amplitude de cette secousse surimposée fournit une mesure directe de la défaillance de l’activation centrale.
Après la contraction maximale volontaire, un autre stimulus électrique est délivré alors que le muscle est complètement relâché, évoquant une secousse au repos (resting twitch). L’amplitude et les propriétés mécaniques de cette secousse au repos, telles que le taux de développement de la force et le temps de relaxation, isolent les propriétés périphériques du muscle. Si la force de la secousse au repos est significativement inférieure à ce qu’elle était avant l’exercice, cela démontre que la fatigue périphérique est présente, car la réduction de force ne peut pas être attribuée à un manque de commande du système nerveux central.
Surveillance continue sur le terrain
Si la stimulation électrique reste un outil indispensable pour la recherche, elle présente des limitations pratiques pour une utilisation quotidienne sur le terrain, car elle nécessite un équipement encombrant et des configurations de tests isométriques. Par conséquent, le domaine des sciences du sport s’appuie souvent sur l’électromyographie de surface (surface electromyography) pour évaluer la fatigue de manière non invasive pendant le mouvement réel. Des capteurs portables (wearable sensors) placés sur le galbe du muscle peuvent enregistrer l’activité électrique produite par les muscles squelettiques lors de la contraction.
À mesure qu’un muscle se fatigue, la vitesse de conduction des potentiels d’action le long de la membrane de la fibre musculaire ralentit. Dans un enregistrement électromyographique continu, cela s’observe comme un décalage de la fréquence médiane du signal vers des fréquences plus basses, accompagné d’une augmentation de l’amplitude globale du signal, le système nerveux central tentant de recruter davantage d’unités motrices pour maintenir la même production de force.
Au-delà de l’activité électrique, la surveillance de la réponse mécanique du muscle offre une autre perspective cruciale sur la fatigue périphérique. Lors d’activités dynamiques, les forces d’impact font vibrer le galbe musculaire et les tissus mous environnants. À mesure que le muscle se fatigue, ses caractéristiques d’amortissement et ses schémas d’activation changent inévitablement. Khassetarash et al. [7], dans leurs recherches sur la fatigue et les vibrations des tissus mous (soft tissue vibrations) lors de la course prolongée, ont démontré que la fréquence et l’amplitude de ces vibrations sont significativement altérées à mesure que l’épuisement se développe. L’utilisation de petits capteurs portables pour capturer ces schémas uniques de vibrations des tissus mous pourrait offrir une fenêtre directe et non invasive sur le stress structurel du muscle et sa capacité déclinante à absorber les chocs au fil du temps. La traduction de ces données électrophysiologiques et biomécaniques en enseignements exploitables permet une surveillance continue et dynamique de la fatigue sans interrompre la séance d’entraînement.
Récupération ciblée et gestion de la charge
Comprendre la distinction entre les limitations métaboliques périphériques, les dommages structurels musculaires et la commande du système nerveux central permet aux entraîneurs et aux kinésithérapeutes d’appliquer des stratégies de récupération ciblées. Si une évaluation révèle une fatigue périphérique sévère liée à la déplétion en glycogène, l’intervention immédiate doit être nutritionnelle. Si la fatigue est caractérisée par des dommages musculaires significatifs et un couplage excitation-contraction altéré, indiqué par une créatine phosphokinase élevée, l’athlète a besoin de repos mécanique et de sommeil pour favoriser la réparation tissulaire. À l’inverse, si les évaluations indiquent une fatigue centrale profonde, les interventions pourraient se concentrer sur la récupération mentale, la réduction de la charge cognitive, ou la mise en place d’un affûtage (tapering) stratégique pour rétablir l’équilibre des neurotransmetteurs et la commande du système nerveux central. En comprenant les origines multiples de la fatigue, les praticiens peuvent s’assurer que les charges d’entraînement sont optimisées et que l’athlète est préparé à performer à son plus haut potentiel.